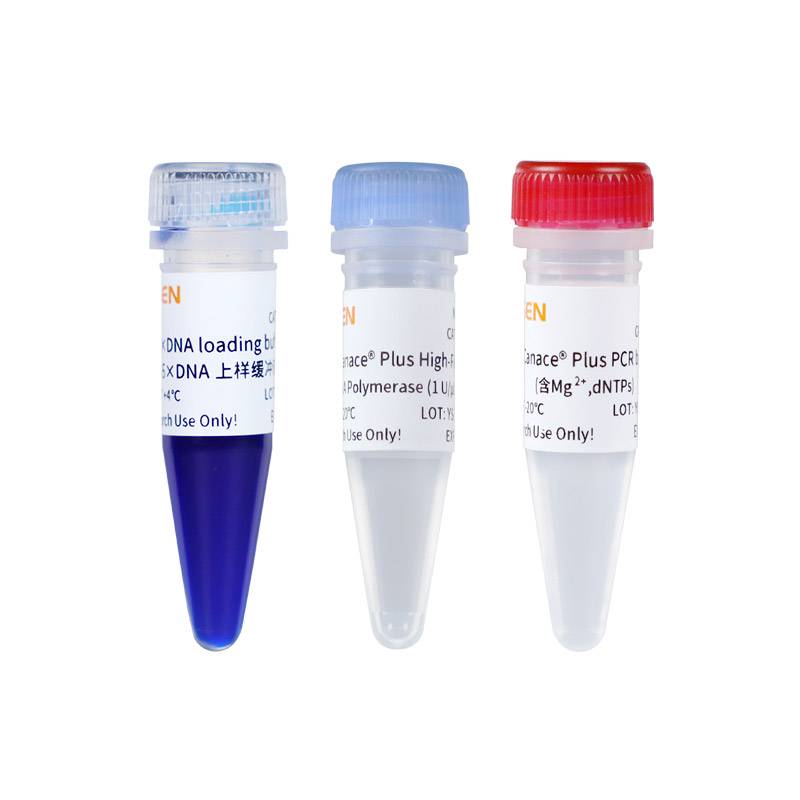
2× Hieff Canace® Gold PCR Master Mix 高保真酶预混液
勾选需要的规格可一次提交;也可以逐个询价。货号会一并带入询价单。

Q:Canace 错配率是多少?Canace Gold 是多少?
A:Taq 酶错配率:0.0002,大约 5kb 有一个碱基发生突变。Canace 约 0.000399%, 是 taq 酶的 52 倍。Canace Gold 与 Canace 保真性是一样的。
Q:Canace 具有保真性的原理?
A:具有 3’-5’的核酸外切酶活性,有校正功能。Q:Canace 高 保 真 酶 基 于 什 么 改 造 的 酶 ? A:Pfu 改造的。
Q:Canace 高保真酶是否为热启动高保真酶?
A:暂时不是热启动,后续会有热启动高保真酶。
Q:Canace 扩增后是平末端产物,如何加 A 尾?
A:仅供参考:先对平末端PCR 产物纯化后,浓度要求至少 20ng/ ul(跑胶图像条带清晰,明亮即可),取 14.5 ul PCR 产物,加入 2 ul Taq Buffer,3ul dNTP,0.5 ul Taq酶,在 72℃反应 10~20min, 后直接回收纯化加A 尾的DNA 片段。
Q:Canace 可以用于酵母菌液吗?
A:不建议用。若要用则需通过煮沸,反复冻融,加蜗牛酶等等处理方法破壁后尝试。
Q:Canace 能用于多少长度的片段?
A:验证范围内长度理论上是可以的(验证范围:简单模板 20kb,复杂模板 10kb)。但具体能否扩出,还与模板和引物等有关。
已发表文献
[1] Zhang C, Zhou B, Gu F, et al. Micropeptide PACMP inhibition elicits synthetic lethal effects by decreasing CtIP and poly(ADP-ribosyl)ation. Mol Cell. 2022;82(7):1297-1312.e8. doi:10.1016/j.molcel.2022.01.020(IF:17.970)
[2] Zhu M, Dai X. Growth suppression by altered (p)ppGpp levels results from non-optimal resource allocation in Escherichia coli. Nucleic Acids Res. 2019;47(9):4684-4693. doi:10.1093/nar/gkz211(IF:11.147)
[3] Rizwan HM, Zhimin L, Harsonowati W, et al. Identification of Fungal Pathogens to Control Postharvest Passion Fruit (Passiflora edulis) Decays and Multi-Omics Comparative Pathway Analysis Reveals Purple Is More Resistant to Pathogens than a Yellow Cultivar. J Fungi (Basel). 2021;7(10):879. Published 2021 Oct 19. doi:10.3390/jof7100879(IF:5.816)
[4] Li T, Zhou B, Luo Z, et al. Structural Characterization of a Neutralizing Nanobody With Broad Activity Against SARS-CoV-2 Variants. Front Microbiol. 2022;13:875840. Published 2022 Jun 2. doi:10.3389/fmicb.2022.875840(IF:5.640)
[5] Wang W, Wang L, Wang L, et al. Transcriptome analysis and molecular mechanism of linseed (Linum usitatissimum L.) drought tolerance under repeated drought using single-molecule long-read sequencing. BMC Genomics. 2021;22(1):109. Published 2021 Feb 9. doi:10.1186/s12864-021-07416-5(IF:3.969)
[6] Wang T, Ren D, Guo H, et al. CgSCD1 Is Essential for Melanin Biosynthesis and Pathogenicity of Colletotrichum gloeosporioides. Pathogens. 2020;9(2):141. Published 2020 Feb 20. doi:10.3390/pathogens9020141(IF:3.018)
[7] Lv Y, Li X, Zhang H, Zou F, Shen B. CircRNA expression profiles in deltamethrin-susceptible and -resistant Culex pipiens pallens (Diptera: Culicidae). Comp Biochem Physiol B Biochem Mol Biol. 2022;261:110750. doi:10.1016/j.cbpb.2022.110750(IF:2.231)
 翌圣高保真DNA聚合酶 解决您的PCR扩增难题
前沿资讯
 关于高保真聚合酶,你想知道的都在这里
技术讲解
 高保真PCR扩增案例│质粒-5500bp-57%GC
应用案例
 高保真PCR扩增案例│水稻cDNA-1600bp-40%~60%GC
应用案例
 高保真PCR扩增案例│指状青霉基因组DNA-6842bp-50%GC
应用案例